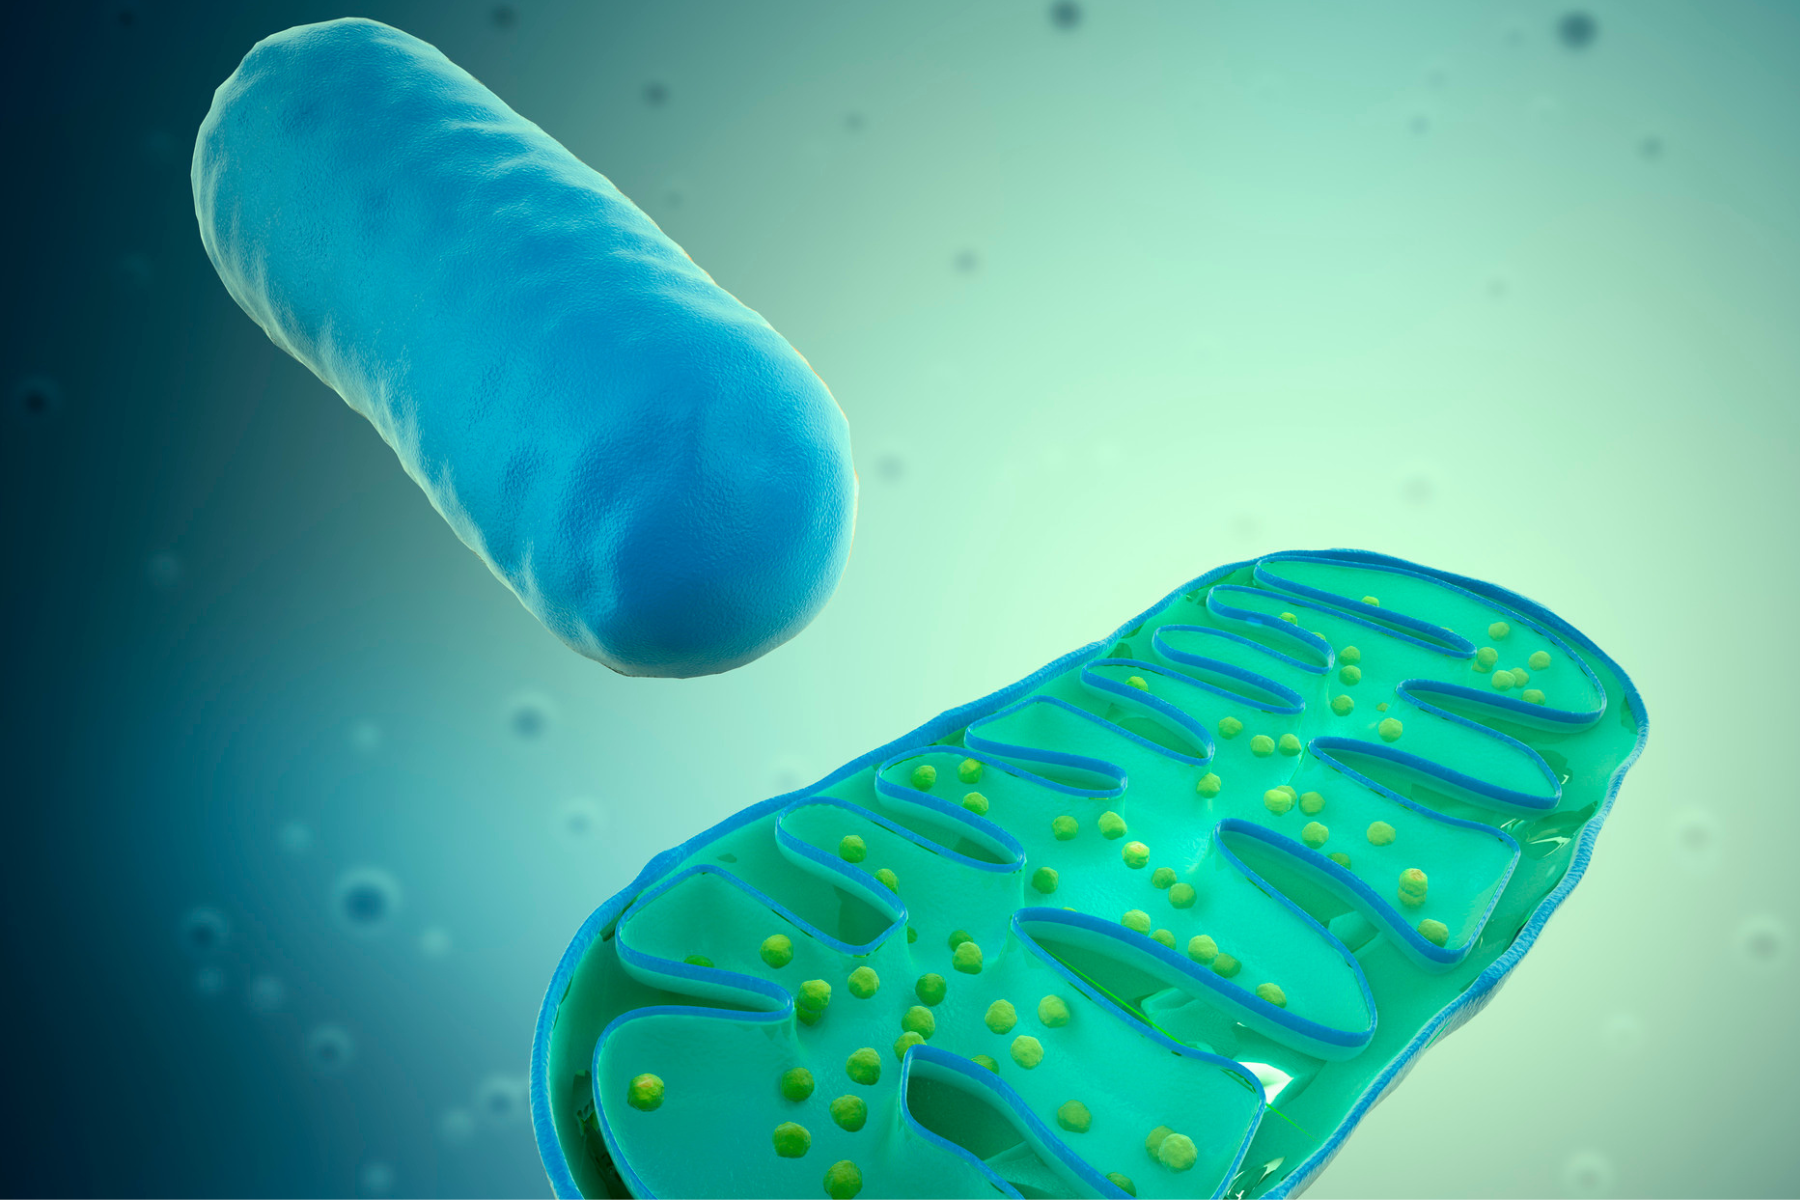
I mitocondri hanno avuto origine da endosimbionti alfa-proteobatterici e si sono evoluti da cellule progenitrici batteriche attraverso la simbiosi all’interno di cellule ospiti eucariotiche. Sono caratterizzati da una struttura a doppia membrana, costituita da una membrana esterna e da una membrana interna che racchiude lo spazio intermembrana (IMS) e la matrice mitocondriale.
La membrana interna forma le creste e incorpora numerosi enzimi e complessi proteici. Sotto la membrana interna si trova la matrice mitocondriale, che contiene un genoma circolare noto come mtDNA e diverse copie di ribosomi. A differenza del DNA nucleare (nDNA), il mtDNA in genere non presenta sequenze introniche e si replica indipendentemente dal genoma dell’ospite.
Il mtDNA umano è lungo circa 16.569 paia di basi azotate e codifica 37 geni, mentre il DNA nucleare sembra che ne contenga tra i 20.000 e i 25.000. Non è organizzato in cromosomi, mentre il DNA nucleare è suddiviso in ben 23 cromosomi e forma, con alcune specifiche proteine, una sostanza chiamata cromatina. Infine, include una serie di nucleotidi che partecipano a due geni contemporaneamente, mentre il DNA nucleare ha geni le cui sequenze di nucleotidi sono ben definite e distinte l’una dalle altre.
In virtù della genesi mitocondriale prima accennata, il DNA mitocondriale ha, con molta probabilità, un’origine batterica. Infatti, sulla base di numerosi studi indipendenti, i biologi molecolari ritengono che la presenza cellulare del DNA mitocondriale sia il risultato dell’incorporazione, da parte delle cellule eucariotiche ancestrali, di organismi batterici indipendenti, molto simili ai mitocondri.
Questa scoperta ha stupito solo in parte la comunità scientifica, in quanto il DNA presente nei batteri è generalmente un filamento di nucleotidi circolare, esattamente come il DNA mitocondriale. La teoria tutt’oggi accettata secondo cui i mitocondri e il DNA mitocondriale avrebbero un’origine batterica prende il nome di “teoria endosimbiontica”, dove il termine “endosimbiosi” indica una collaborazione tra due organismi, che prevede l’inglobamento di uno all’interno dell’altro, allo scopo di trarre un certo vantaggio. I 37 geni del DNA mitocondriale codificano per: proteine, RNA transfer (tRNA) e RNA ribosomiale (rRNA). Nello specifico:
- 13 codificano per 13 proteine costituenti le subunità enzimatiche della catena respiratoria mitocondriale deputate alla realizzazione della fosforilazione ossidativa;
- 22 codificano per 22 molecole di tRNA;
- 2 codificano per 2 molecole di rRNA;
Le molecole di tRNA e rRNA sono fondamentali alla sintesi delle suddette 13 proteine, in quanto compongono il macchinario che ne regola la produzione.
Quindi, in altre parole, il DNA mitocondriale possiede le informazioni per produrre un determinato set di proteine e gli strumenti necessari alla sintesi di quest’ultime.
I 13 geni codificanti proteine sono organizzati in due cluster principali: uno codifica le subunità del complesso respiratorio I (NADH deidrogenasi), mentre l’altro codifica le subunità degli altri complessi respiratori e nello specifico il complesso III (Citocromo bc1), il complesso IV (Citocromo c ossidasi) e del complesso V (ATPasi). Queste proteine sono componenti essenziali della catena di trasporto degli elettroni durante la fosforilazione ossidativa.
Il mtDNA contiene anche diverse regioni non codificanti e, in particolare, una regione di controllo all’interno della quale si trova il D-loop (displacement loop) che si forma quando un breve filamento di DNA (chiamato DNA 7S) si inserisce stabilmente nella doppia elica, separando i due filamenti originali, e creando una struttura ad anello che contiene il promotore del filamento pesante (HSP1 e HSP2) e un promotore del filamentoleggero (LSP), agendo come un hub di controllo fondamentale per l’espressione genica e l’origine direplicazione del filamento pesante. Questa struttura unica fornisce l’ambiente fisico e chimico necessario affinché i mitocondri possano svolgere le loro diverse funzioni.
Il ruolo dei mitocondri nella bioenergetica, nell’omeostasi e nella segnalazione cellulare
Recenti scoperte hanno dimostrato che i mitocondri svolgono diversi ruoli centrali nelle cellule, oltre alla lorofunzione energetica primaria. I mitocondri sono ora riconosciuti come organelli fondamentali non solo per la conversione dell’energia, ma anche per la trasduzione del segnale e la regolazione della morte cellulare. Lafunzione principale dei mitocondri rimane certamente la generazione di ATP attraverso la fosforilazioneossidativa (OXPHOS). In questo processo, le cellule estraggono elettroni dalla nicotinammide adenina dinucleotide (NADH) e dal flavin adenina dinucleotide (FADH2), forme biologicamente attive della vitamina B3 e B2 rispettivamente, e li utilizzano per pompare protoni attraverso la membrana mitocondriale interna (IMM), creando un gradiente protonico. Questo gradiente guida la sintesi di ATP tramite l’ATP sintasi, un complessoenzimatico incorporato nell’IMM, ma che di fatto costituisce il complesso V della catena respiratoria, la cui definizione funzionale ha chiarito in modo importante il meccanismo dell’energetica mitocondriale e il cui funzionamento si basa sull’ipotesi chemiosmotica formulata dal biochimico britannico Peter Mitchell nel 1961, teoria che gli valse il Premio Nobel per la Chimica nel 1978.
Gli elettroni provenienti da NADH e FADH2 vengono trasferiti attraverso una serie di complessi proteici nella catena di trasporto degli elettroni (ETC), combinandosi infine con l’ossigeno per formare acqua, un processoche è accoppiato alla generazione del gradiente protonico. La catena respiratoria mitocondriale (MRC) è un convertitore di energia chiave nelle cellule eucariotiche, costituito da quattro complessi (I-IV) e due trasportatori di elettroni incorporati nella IMM.
I quattro complessi trasferiscono elettroni da varie viemetaboliche all’ossigeno molecolare, stabilendo un gradiente elettrochimico su entrambi i lati della IMM per alimentare la sintesi di ATP. Il complesso I catalizza l’ossidazione del NADH ridotto e la riduzione dell’ubichinone, la forma ossidata del Coenzima Q 10, con il contributo di due elettroni e quattro protoni, promuovendo la formazione di un gradiente protonico attraverso la IMM.
Il complesso II ossida l’acido succinico a fumarato e riduce l’ubichinone a ubichinolo, forma ridotta del Coenzima Q10, per il trasferimento di elettroni. Il complesso III combina l’ossidazione dell’ubichinolo e la riduzione del citocromo C: durante il trasferimento di elettroni, assorbe due protoni dalla matrice mitocondriale e ne rilascia quattro nello spazio intermembrana. Il rilascio di 4 protoni nello spazio intermembrana genera una forza motrice protonica, fondamentale per la produzione di ATP tramite l’enzima ATP sintasi, Il complesso IV trasferisce gli elettroni che il citocromo C rilascia direttamente all’ossigeno e lo riduce ad acqua. In questo processo vengono trasferiti due protoni contro il gradiente di concentrazione.
Il complesso V, cioè la sopracitata ATP sintasi, comprende due domini funzionali, F0 e F1, che utilizzano il gradiente protonico creatosi per catalizzare la sintesi di ATP, tramite un meccanismo che potrebbe essere paragonato a quello da un di un mulino ad acqua per produrre energia. Ciò avviene perché i protoni accumulatisi nello spazio intermembrana non possono rientrare nella matrice in quanto la membrana mitocondriale interna essendo quest’ultima impermeabile agli H+ e quindi sono costretti a utilizzare il canale costituito dalla ATP sintasi: il flusso protonico che avviene attraverso questa speciale proteina genera la produzione di ATP alla base dell’energetica cellulare.
Da notare il ruolo centrale che assume il Coenzima Q10, nelle sue forme ossidata e ridotta, come autentico smistatore di elettroni intercalato fra i complessi I, II e III.
I meccanismi di trasduzione del segnale mitocondriale sono complessi e diversificati, e coprono un’ampia gamma di riconoscimento ed elaborazione del segnale dalla cellula all’ambiente esterno, come lo stress ossidativo, la via di segnalazione mtROS che rappresenta il meccanismo con cui le specie reattive dell’ossigeno prodotte dai mitocondri fungono da secondi messaggeri, poi la segnalazione del Ca2+, la segnalazione del genoma mitocondriale, la trasduzione del segnale termico e infine la segnalazione infiammatoria. Canali anionici voltaggio-dipendenti (VDAC) nella membrana mitocondriale esterna (OMM) mediano la trasduzione del segnale tra il citoplasma e i mitocondri. Inoltre, la dinamica mitocondriale, inclusi movimento, fissione e fusione che a breve andremo a vedere, è strettamente legata a queste vie di segnalazione.
I mitocondri lavorano in concerto con il nucleo e molteplici organelli per costruire un sistema di elaborazione delle informazioni mitocondriali (MIPS), che può essere riassunto in tre collegamenti. In primo luogo, i mitocondri hanno la capacità di percepire i segnali: questi segnali includono cambiamenti nella concentrazione dei metaboliti, segnali ormonali e stress ossidativo. In secondo luogo, l’integrazione delle informazioni e dei segnali di processo avviene attraverso meccanismi di interazione fisica e diffusione. Infine, i mitocondri producono segnali di output che regolano la funzione di altri organelli e la fisiologia sistemica. Questi segnali di output possono influenzare il metabolismo cellulare, l’espressione genica, il ciclo cellulare e altri aspetti, regolando così le attività fisiologiche cellulari.
Dinamica mitocondriale
La dinamica mitocondriale si riferisce al processo continuo di fissione e fusione all’interno della cellula, processi dinamici contrapposti che regolano la distribuzione, la quantità, le dimensioni e la forma dei mitocondri in un equilibrio dinamico. Nello specifico essa, che comprende, oltre ai processi di fusione e fissione, la mitofagia e il trasporto mitocondriale: è un meccanismo regolatorio critico che mantiene l’integrità funzionale e l’omeostasi metabolica dei mitocondri all’interno delle cellule.
Fissione e fusione mitocondriale
Le evidenze scientifiche indicano che la fissione e la fusione mitocondriale sono processi dinamici regolati da proteine specifiche che controllano la morfologia e la funzione mitocondriale. La fissione mitocondriale è il processo in cui un singolo mitocondrio si divide in due o più organelli distinti ed è principalmente mediata da una proteina chiave costituita dalla GTPasi citosolica dinamina-correlata o Drp1, che si associa alla membrana esterna mitocondriale tramite adattatori specifici formando il “divisoma mitocondriale” per eseguire la divisione.
Drp1 interagisce con quattro proteine leganti la membrana mitocondriale esterna (OMM), tra cui la proteina della fissione mitocondriale 1 (Fis1), il fattore di fissione mitocondriale (Mff), la proteina dinamica mitocondriale(MiD) 49 e MiD51. Drp1 e Fis1 sono comunque le proteine più critiche coinvolte nella divisione mitocondriale. Drp1 viene reclutato nei siti di costrizione mitocondriale, spesso facilitato dalle interazioni con l’actina e il reticolo endoplasmatico (RE), portando alla formazione di due mitocondri figli. È un processo essenziale per la biogenesi (la creazione di nuovi mitocondri durante la divisione cellulare) e per la risposta allo stress. La fissione isola le porzioni di mitocondrio gravemente danneggiate o con DNA mutato per permetterne la distruzione tramite degradazione selettiva (mitofagia), salvaguardando il resto della rete.
Al contrario, la fusione mitocondriale è il processo in cui due o più mitocondri si uniscono per formare una rete tubulare continua. e coinvolge due classi di proteine dinamina-simili: la mitofusina 1 (Mfn1) e la mitofusina 2 (Mfn2), che mediano la fusione della membrana esterna, mentre la fusione della membrana interna è regolata dalla proteina dell’atrofia ottica 1 (OPA1). Il processo permette ai mitocondri di rimescolare il loro contenuto (proteine, lipidi e DNA mitocondriale – mtDNA); in questo modo, i mitocondri sani possono “compensare” quelli parzialmente danneggiati condividendo materiale genetico integro e massimizzando l’efficienza nella produzione di energia (ATP).
Questi processi sono regolati da meccanismi complessi che includono interazioni proteina-proteina, modifiche post-traduzionali e segnali cellulari che rispondono allo stress e alle esigenze metaboliche. La presenza di entrambi le mitofusine Mfn1 e Mfn2 aumenta significativamente l’efficienza della fusione. In particolare, la carenza di Mfn1 porta a una marcata frammentazione mitocondriale, mentre la carenza di Mfn2 determina una proporzione maggiore di mitocondri con forme sferiche o ovoidali.
La regolazione coordinata di fissione e fusione è cruciale per mantenere la qualità mitocondriale, la distribuzione del DNA mitocondriale e la funzione energetica cellulare.
Il perfetto bilanciamento tra fissione e fusione è la chiave per l’adattamento metabolico della cellula. Se i meccanismi si alterano, possono insorgere gravi patologie. Uno spostamento eccessivo verso la fissione frammenta i mitocondri e porta all’apoptosi (morte cellulare), mentre un difetto di fissione impedisce la rimozione dei mitocondri guasti. Disfunzioni in questi processi sono implicate in malattie neurodegenerative (es. Parkinson), patologie cardiache e forme tumorali.
Mitofagia e controllo di qualità mitocondriale
L’autofagia mitocondriale (mitofagia) è un processo di autofagia selettiva che indirizza alla degradazione i mitocondri danneggiati o disfunzionali, svolgendo un ruolo fondamentale nel controllo di qualità mitocondriale. Quando i mitocondri sono danneggiati o in caso di ischemia o ipossia, le mutazioni del DNA mitocondriale (mtDNA) si accumulano gradualmente sotto l’effetto dei ROS, con conseguente riduzione del potenziale di membrana mitocondriale intracellulare (Δψm) e danni depolarizzanti, che innescano l’autofagia mitocondriale.
I meccanismi molecolari della mitofagia includono le vie dipendenti dall’ubiquitina, nello specifico il “percorso PINK1-Parkin” e le vie indipendenti dall’ubiquitina con un meccanismo recettore-mediato. In ogni caso entrambi i meccanismi culminano con il loro incapsulamento negli autofagosomi, vescicole a doppia membrana che la cellula utilizza per inglobare e isolare componenti danneggiati o non più necessari, e la successiva distruzione tramite fusione con i lisosomi del citoplasma.
Pathway PINK1-Parkin
Quando un mitocondrio è danneggiato, la perdita del potenziale di membrana mitocondriale porta all’accumulo della proteina chinasi PINK1 sulla membrana esterna che attiva la ubiquitina-ligasi Parkin, che ubiquitina le proteine mitocondriali, segnalandole per il reclutamento di recettori dell’autofagia e la formazione dell’autofagosoma.
La ubiquitinazione delle proteine mitocondriali è centrale per il riconoscimento selettivo da parte dei recettori dell’autofagia, che facilitano l’incorporazione dei mitocondri danneggiati negli autofagosomi.
Recettori mitocondriali
Alcuni recettori presenti sulla membrana mitocondriale presentano nel loro dominio citosolico una sequenza peptidica specifica chiamata LIR (LC3-Interacting Region), che si aggancia direttamente alle molecole di LC3 presenti sulla membrana dell’autofagosoma in formazione, in risposta a stress ipossico o altri stimoli
Eliminazione tramite lisosoma
Gli autofagosomi formati si fondono con i lisosomi, degradando i mitocondri e riciclando i loro componenti. In sintesi, possiamo affermate che una mitofagia fisiologica mantiene la popolazione mitocondriale sana, prevenendo accumulo di ROS e danno cellulare, mentre una mitofagia patologica conduce ad alterazioni del processo che sono associate a neurodegenerazione, malattie cardiovascolari, cancro, fibrosi renale e autoimmunità.
La biogenesi mitocondriale è un è il processo mediante il quale la cellula aumenta la propria massa mitocondriale che coinvolge la replicazione del DNA, la trascrizione, la traduzione e il trasporto dei fosfolipidi tra gli organelli. I segnali retrogradi mitocondriali come i livelli di ATP, ROS e Ca2+ modulano le cascate di segnalazione intracellulare, influenzando la biogenesi mitocondriale.
È regolata da cascate di trasduzione del segnale innescate da stress fisiologici (es. esercizio fisico o restrizione calorica), che attivano il coattivatore trascrizionale PGC-1-α.
Il processo segue una precisa sequenza di eventi biochimici:
- Percezione dello stimolo: segnali metabolici (come, ad esempio, un aumento del rapporto AMP/ATP) attivano chinasi cellulari come l’enzima AMPK, o deacetilasi come le Sirtuine.
- Attivazione trascrizionale: queste chinasi fosforilano e attivano PGC-1—α, il principale regolatore della biogenesi.
- Sintesi proteica: il PGC-1-–α si lega e attiva i “fattori respiratori nucleari 1 (NRF1) e 2 (NRF2)” che promuovono la trascrizione dei geni per le proteine mitocondriali. Tali proteine vengono poi sintetizzate nel citoplasma e importate negli organelli.
- Espansione del genoma: parallelamente, viene attivato il fattore di trascrizione TFAM per replicare e trascrivere il DNA mitocondriale.
In sintesi, la dinamica mitocondriale è un processo altamente regolato, fondamentale per la funzione mitocondriale e cellulare. Comprendere i meccanismi molecolari che governano questa dinamica è cruciale per chiarire come la forma dei mitocondri si intrecci con la loro funzione e per approfondire la nostra conoscenza delle malattie associate a difetti della morfologia mitocondriale.
L’ubiquitinazione è una modificazione post-traduzionale in cui la proteina ubiquitina si lega covalentemente a una proteina bersaglio. Questa “etichettatura” funge da segnale molecolare, guidando la proteina verso la sua degradazione (per mantenere l’omeostasi cellulare) o regolandone altre funzioni.
Il coattivatore 1-alfa del recettore attivato dal proliferatore dei perossisomi gamma (noto come PGC-1α) è una proteina che funge da “master regulator” (regolatore principale) del metabolismo energetico e della biogenesi mitocondriale. Stimola la creazione di nuovi mitocondri, migliora la produzione di ATP e modula l’ossidazione dei grassi e del glucosio. Per questi motivi risulta fortemente espresso nei tessuti ad alto consumo energetico (come muscoli scheletrici, cuore e fegato) ed è attivato da stimoli fisiologici come l’esercizio fisico e l’esposizione al freddo.
Articolo tratto dal numero di settembre 2026 di Medicina Integrata
Bibliografia
- Anderson S, Bankier AT, Barrell BG, et al. Sequence and organization of the human mitochondrial genome. Nature. 1981;290(5806):457-465.
- Friedman JR, Nunnari J. Mitochondrial form and function. Nature. 2014;505(7483):335-343.
- Hatefi Y. The mitochondrial electron transport and oxidative phosphorylation system. Annu Rev Biochem. 1985;54:1015-1069.
- Galluzzi L, Kepp O, Kroemer G. Mitochondria: master regulators of danger signalling. Nat Rev Mol Cell Biol. 2012;13(12):780-788.
- Kalia R, Wang RY, Yusuf A, et al. Structural basis of mitochondrial receptor binding and constriction by DRP1. Nature. 2018;558(7710):401-405.
- Palmer CS, Osellame LD, Laine D, Koutsopoulos OS, Frazier AE, Ryan MT. MiD49 and MiD51, new components of the mitochondrial fission machinery. EMBO Rep. 2011;12(6):565-573.
- Friedman JR, Lackner LL, West M, DiBenedetto JR, Nunnari J, Voeltz GK. ER tubules mark sites of mitochondrial division. Science. 2011;334(6054):358-362.
- Losón OC, Song Z, Chen H, Chan DC. Fis1, Mff, MiD49, and MiD51 mediate Drp1 recruitment in mitochondrial fission. Mol Biol Cell. 2013;24(5):659-667.
- Vives-Bauza C, Zhou C, Huang Y, et al. PINK1-dependent recruitment of Parkin to mitochondria in mitophagy. Proc Natl Acad Sci U S A. 2010;107(1):378-383.
- Tilokani L, Nagashima S, Paupe V, Prudent J. Mitochondrial dynamics: overview of molecular mechanisms. Essays Biochem. 2018;62(3):341-360.
- Raynald Bergeron, Jian Ming Ren, Kevin S. Cadman, Irene K. Moore, Pascale Perret, Marc Pypaert, Lawrence H. Young, Clay F. Semenkovich, and Gerald I. Shulman. American Journal of Physiology-Endocrinology and Metabolism 2001 281:6, E1340-E1346
- Fan H, Ding R, Liu W, et al. Heat shock protein 22 modulates NRF1/TFAM-dependent mitochondrial biogenesis and DRP1-sparked mitochondrial apoptosis through AMPK-PGC1α signaling pathway to alleviate the early brain injury of subarachnoid hemorrhage in rats. Redox Biol. 2021;40:101856.
- Toyama EQ, Herzig S, Courchet J, et al. Metabolism. AMP-activated protein kinase mediates mitochondrial fission in response to energy stress. Science. 2016;351(6270):275-281.
- Laker RC, Drake JC, Wilson RJ, et al. Ampk phosphorylation of Ulk1 is required for targeting of mitochondria to lysosomes in exercise-induced mitophagy. Nat Commun. 2017;8(1):548.