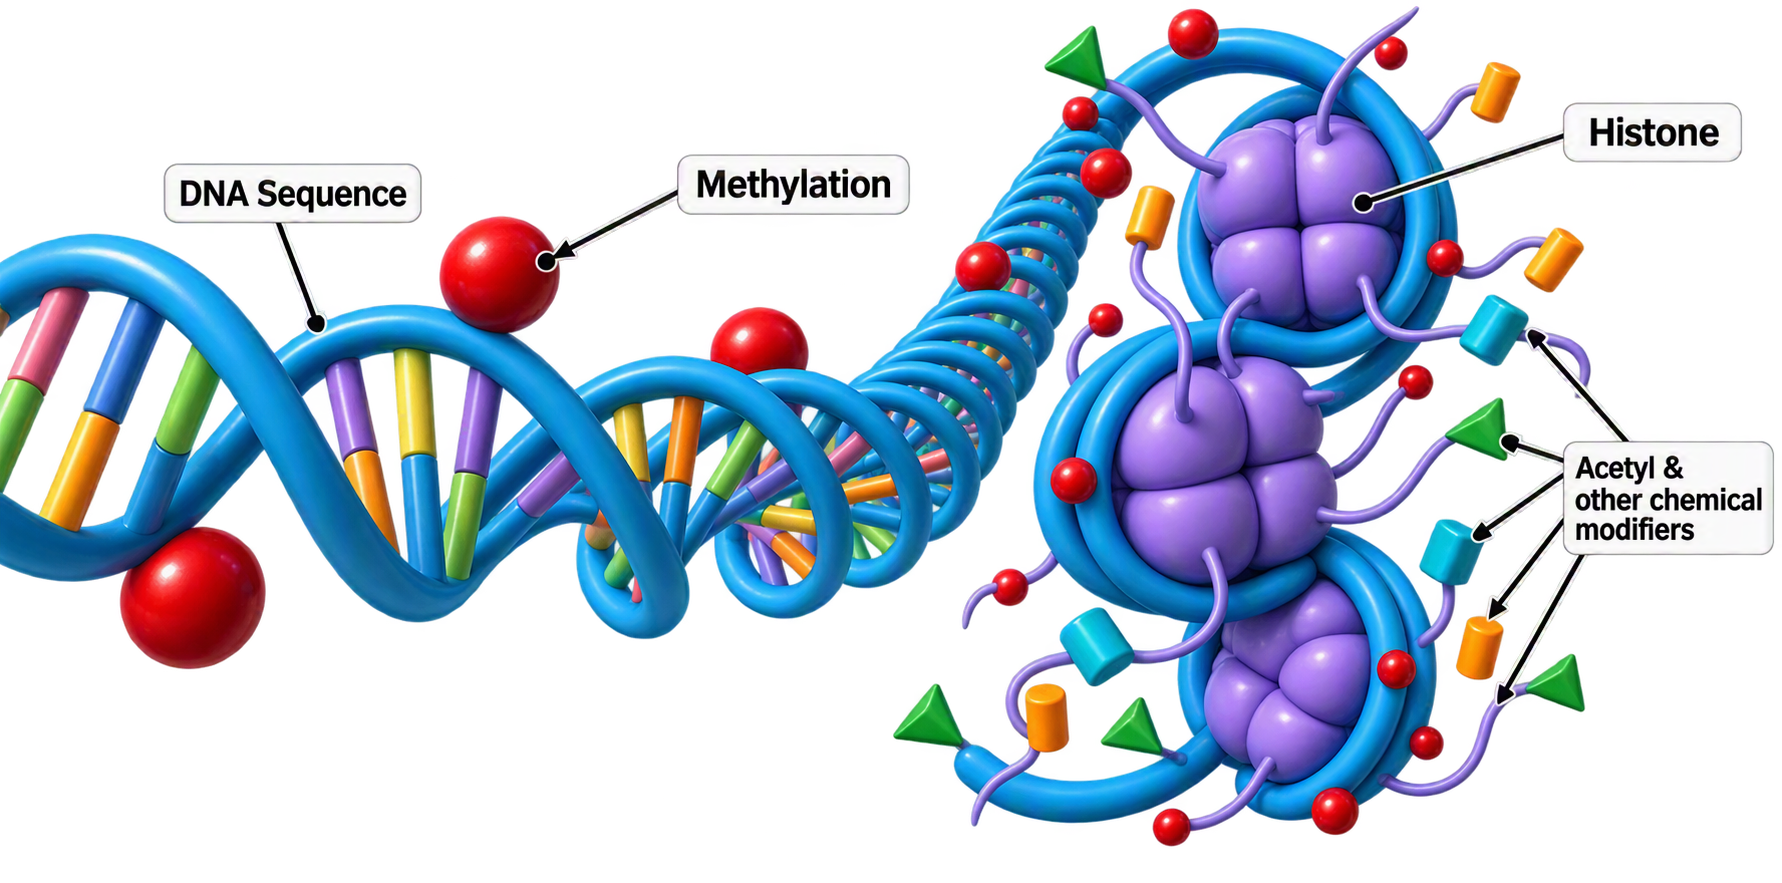
I cambiamenti epigenetici sono quelli che influenzano l’attività o l’espressione genica senza alterare in alcun modo la sequenza del DNA. Modifiche o segni epigenetici si verificano sia sugli istoni sia sul DNA tramite una rete di proteine che inducono cambiamenti, aggiungendo marchi epigenetici (scrittori) e alterano lo stato esistente rimuovendo i segni epigenetici o rispondono a specifici segni epigenetici (lettori).
Questi segnali biochimici si trasmettono alle cellule figlie durante la divisione cellulare (mitosi) e, in determinati casi, alle generazioni future tramite i gameti (meiosi). Fattori ambientali (come dieta, stress, attività fisica e inquinamento) possono di fatto influenzare l’attività dei geni, “accendendoli” o “spegnendoli”, senza modificare la sequenza del DNA. Esistono diversi ampi gruppi di modifiche epigenetiche: acetilazione, metilazione, fosforilazione e ubiquitinazione.
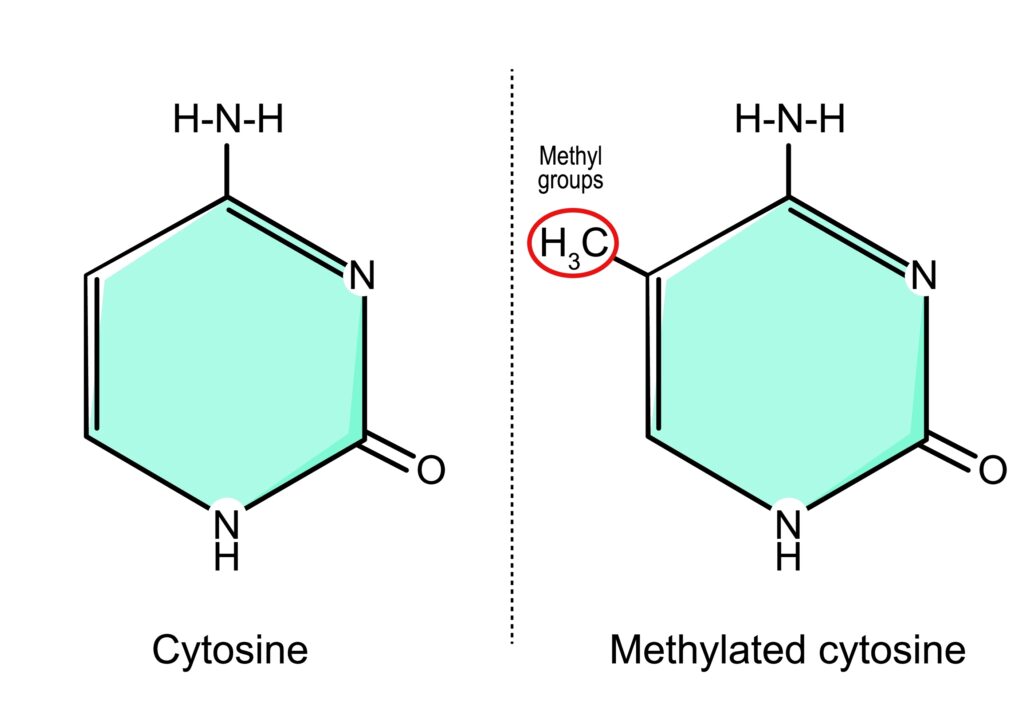
Nello specifico, in questa dissertazione trattiamo la metilazione, processo che modifica il genoma senza alterarne la sequenza e ne permette un adattamento rapido e permanente a modifiche ambientali. La metilazione è l’aggiunta di un gruppo metile (-CH3) direttamente al DNA (principalmente a una base di citosina), o alle code degli istoni sui residui amminoacidici di arginina e lisina. È utile ricordare che gli istoni sono proteine basiche cariche positivamente che fungono da “rocchetto” per il DNA (carico negativamente). Mentre la metilazione del DNA è generalmente associata al silenziamento genico poiché, se presente in un promotore, ne inibisce la trascrizione e assume, quindi, importanza per la prevenzione del cancro. L’introduzione di gruppi metilici sugli istoni è associata sia all’attivazione genica sia al silenziamento in quanto, in virtù al numero di gruppi aggiunti e dallo specifico amminoacido bersaglio sulla coda dell’istone (es. lisina o arginina) può rendere la cromatina compatta (eterocromatina) e perciò non disponibile all’azione dei fattori di trascrizione, oppure la metilazione di altri residui ha l’effetto opposto con il rilassamento della struttura della cromatina (eucromatina) attorno al gene promuovendo la trascrizione.
La metilazione del DNA si riferisce al processo in cui l’estremità 5′ nella sequenza genomica del DNA viene convertita da citosina a 5′-metilcitosina (5mC) tramite l’azione di una classe di enzimi conosciuti come DNA metiltransferasi. Questo processo avviene principalmente a livello dei dinucleotidi CpG (una citosina seguita da una guanina), che spesso si concentrano in regioni chiamate isole CpG. Questo metodo di modifica, pur non alterando la sequenza genica, può influenzare il modello di espressione dei geni ed è una delle principali forme epigenetiche di regolazione dell’espressione genica nei mammiferi.
In quanto importante modifica epigenetica, la metilazione del DNA svolge un ruolo cruciale nella ricerca biomedica moderna. Le Isole CpG sono costituite da tratti di genoma, nei quali le sequenze CpG sono dieci volte più frequenti e si trovano soprattutto in prossimità dei siti di inizio della trascrizione.
Come sopra menzionati, gli autori della metilazione del DNA sono una specifica classe di enzimi conosciuti come DNA metiltransferasi (DNMT). Nello specifico DNMT1, un membro di questa famiglia, è espresso in cellule proliferanti ed è responsabile della riproduzione dei pattern di metilazione nei filamenti di DNA figli appena formati durante la replicazione del DNA. Sebbene l’espressione sia ridotta nel tessuto somatico adulto, la metilazione è prominente durante lo sviluppo embrionale precoce e si ritiene che venga effettuata dagli isoenzimi della famiglia indicati come DNMT3A e DNMT3B sulle regioni impoverite dei nucleosomi del genoma. Un altro isoenzima della famiglia, DNMT3L, aiuta a mirare e regolare la funzione di DNMT3A/3B e svolge un ruolo nella metilazione de novo; è di fatto un omologo non catalitico di DNMT3A/B che ne aiuta il legame al DNA bersaglio.
Proteine aggiuntive e le deacetilasi degli istoni (HDAC) servono a indirizzare le proteine DNMT verso le regioni appropriate del genoma, regolare l’attività delle metiltransferasi e coordinare ulteriori marchi epigenetici con la metilazione del DNA.
Riassumendo possiamo quindi definire due tipi di metilazione del DNA:
- Metilazione di mantenimento: descrive il processo con cui un filamento già metilato di DNA con doppio filamento porta alla modifica del corrispondente filamento non metilato durante la replicazione del DNA, preservando così il pattern originale di metilazione. Questa forma di metilazione è principalmente catalizzata dalla metiltransferasi di mantenimento (come DNMT1), che replica accuratamente i modelli stabiliti dai filamenti di DNA genitori ai filamenti figli durante la replicazione, garantendo una trasmissione stabile delle informazioni genetiche. Dal punto di vista clinico, ha un significato per la ricerca sulle malattie ereditarie.
- Metilazione de novo: si riferisce al processo di aggiunta di gruppi metilici a siti di DNA completamente nuovi senza fare affidamento su filamenti di DNA metilati esistenti. Questo tipo di metilazione si verifica principalmente durante le prime fasi dello sviluppo embrionale e in alcuni processi di riprogrammazione cellulare. Coinvolge specifiche metiltransferasi, come DNMT3A e DNMT3B, che possono aggiungere gruppi metili alle molecole di DNA in assenza di un modello di metilazione preesistente. Clinicamente, questo meccanismo è applicabile in studi relativi allo sviluppo embrionale, alla differenziazione cellulare e alla ricerca sul cancro.
Chiediamoci quindi a cosa serve la metilazione del DNA. Ha due funzioni cruciali:
- inibizione dell’espressione genica poiché la metilazione della citosina è in stretto rapporto con la formazione di cromatina “silenziata”;
- mantenimento dell’integrità genomica attraverso l’inattivazione di sequenze parassite: la metilazione è fondamentale per mantenere silenti i genomi dei trasposoni e dei retro-trasposoni.
Ipo- e ipermetilazine del DNA: correlazione con la carcinogenesi
L’ipometilazione del DNA è una modificazione epigenetica che consiste nella riduzione dei gruppi metile sul genoma, portando all’attivazione o sovraespressione di geni. Questo processo risulta fondamentale per lo sviluppo, ma se anomalo può causare instabilità cromosomica, invecchiamento biologico precoce e favorire l’insorgenza di tumori. Come decritto, la metilazione del DNA generalmente funziona come un “interruttore” per silenziare i geni. Quando si verifica un’ipometilazione, questo blocco viene meno.
Tipicamente, le isole CpG (regioni in cui i nucleotidi citosina-guanina compaiono in tandem con una frequenza >50%) nelle cellule normali sono ipermetilate rispetto al resto del genoma proprio per silenziare determinati geni.
Tuttavia, se le isole CpG all’interno della regione promotrice dei geni soppressori tumorali (TSG) vengono ipermetilate dai DNMT, che sono tipicamente sovraespresse nel cancro, aumentano la tumorogenicità diminuendo la capacità di soppressione tumorale. L’ipermetilazione delle isole CpG può interrompere il legame con la proteina CTCF (CCCTC-binding factor), portando alla perdita di regioni isolanti chiave e alla conseguente attivazione degli oncogeni; trattasi di una proteina che funge da supporto nel mediare l’organizzazione del genoma e l’espressione dei geni al suo interno.
Tutte le DNA metilasi prima menzionate quali DNMT1, DNMT3A e DNMT3B sono sovraespresse in molti tumori, inclusi leucemie mieloidi acute e croniche, nonché carcinomi di colon, seno e stomaco. L’ipermetilazione dei corpi genici e delle regioni intergeniche del DNA è anch’essa correlata e può contribuire all’insorgenza del cancro.
Cancellatori della metilazione del DNA
La metilazione del DNA diventa patologica quando interessa le isole CpG presenti nei geni oncosoppressori, quali ad esempio TP53, TP27, BRCA1, BRCA2, e RB1, solo per citarne alcuni dei principali; la 5-metilcitosina, come visto un marchio repressivo scritto de novo da DNMT3A e DNTM3B e mantenuto da DNTM1, era originariamente ritenuta passivamente esaurita durante la replicazione del DNA. Tuttavia, studi successivi hanno dimostrato la sua rimozione attiva è mediata di una speciale categoria di enzimi della famiglia TET (Ten-Eleven Translocation), che catalizzano l’ossidazione della citosina metilata (5mC) convertendola in 5-idrossimetilcitosina (5hmC) e successivamente in altre forme ossidate, facilitando la demetilazione attiva del DNA. Questo avviene specificamente tramite ossidazione sequenziale mediata da TET1, TET2 o TET3 di 5-metilcitosina (5-mC) in 5-idrossimetilcitosina (5-hmC), 5-formilcitosina (5-fC) e 5-carbossilcitosina (5-caC). Questa ossidazione iterativa è certamente favorita dalla presenza di ossigeno, ma anche di ioni ferro bivalenti e da enzimi dipendenti dall’oxoglutarato.
Inoltre, la demetilazione delle isole CpG consente alla proteina CTCF di legarsi al DNA regolando positivamente l’attivazione genica e le funzioni isolanti esercitate da questa proteina, poiché previene interazioni aberranti tra promotori e potenziatori, favorendo una corretta organizzazione tridimensionale della cromatina.
Le TET svolgono un ruolo protettivo fondamentale: la perdita o la riduzione della loro attività (mutazioni, inibizione da oncometaboliti) porta a un fenotipo di ipermetilazione del DNA, con silenziamento di geni oncosoppressori e deregolazione trascrizionale, associata a ipermetilazione aberrante, instabilità genomica e sviluppo di neoplasie. Mentre livelli ridotti di 5hmC (prodotto diretto delle TET) sono un marcatore epigenetico negativo, che correlano con progressione tumorale e prognosi sfavorevole in diversi tumori, per cui 5hmC viene proposto come biomarcatore precoce per diagnosi e monitoraggio di neoplasie, grazie a nuove tecnologie ultrasensibili. Per citare un esempio, una recente metanalisi su 1.736 pazienti oncologici mostra che bassi livelli di 5hmC sono associati a maggiore rischio di metastasi linfonodale e stadio avanzato di malattia, oltre che a una sopravvivenza globale significativamente peggiore.
Va sottolineato che le TET proteggono la stabilità genomica anche attraverso la regolazione di retrotrasposoni e la prevenzione della derepressione di elementi trasponibili, prima citati, che può portare a danno genomico e alterazioni dello sviluppo.
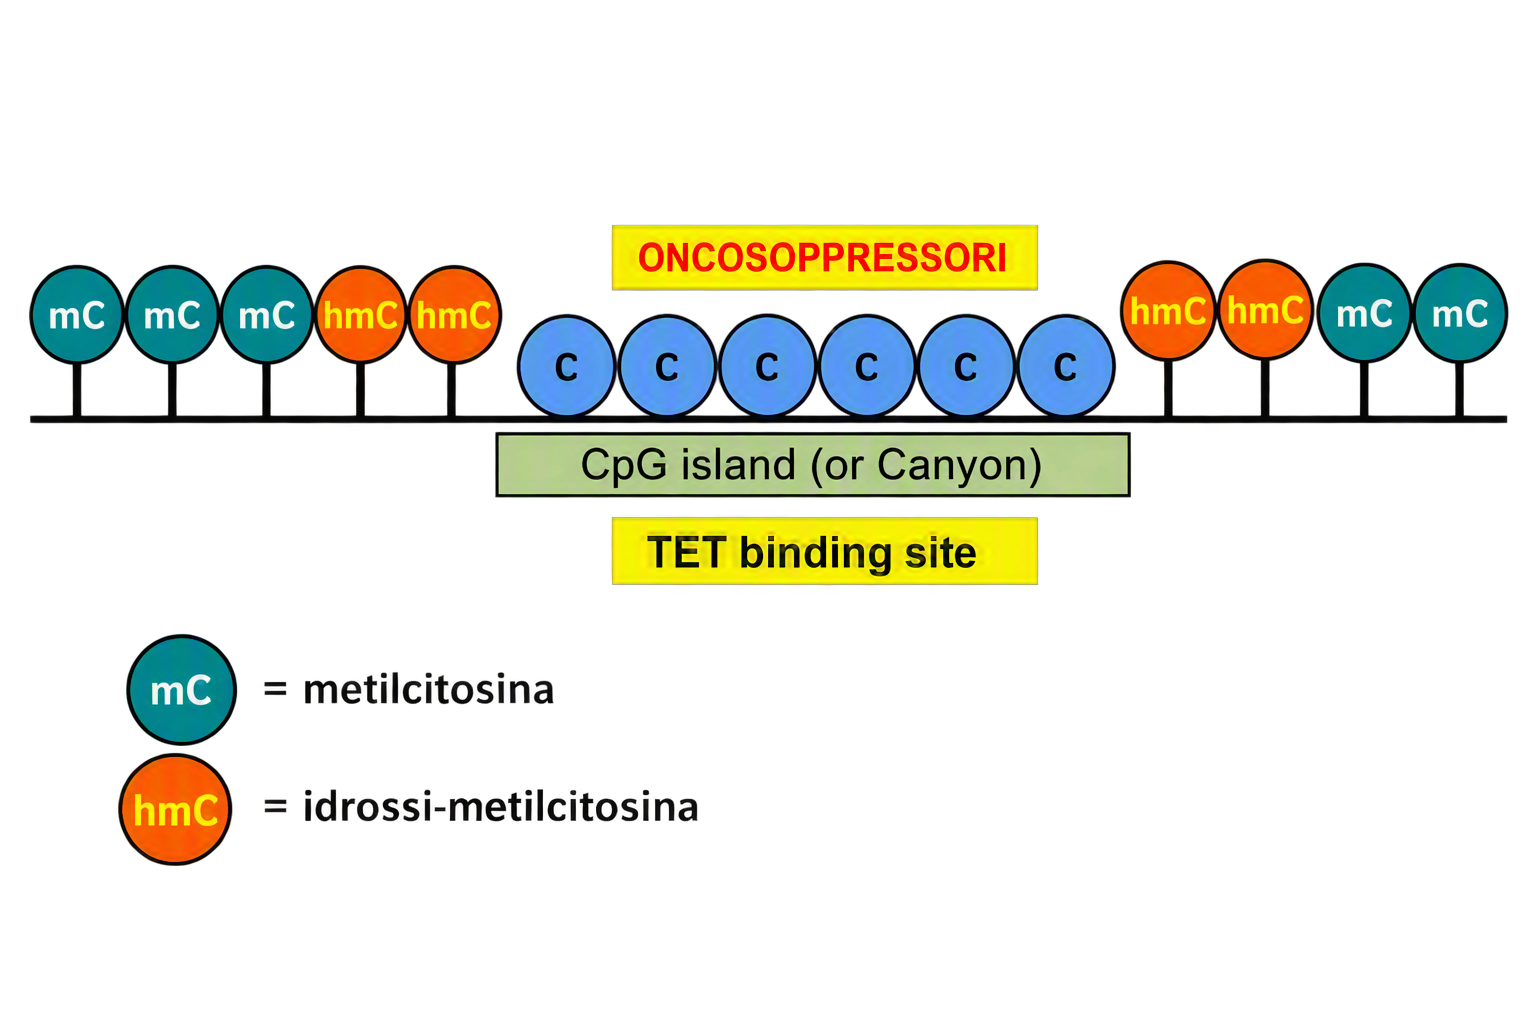
La figura 2 illustra i siti di azione delle TET dove, in presenza di ossigeno, l’idrossilazione della metilcitosina funga da cuscinetto protettore per evitare la ipermetilazione nelle isole CpG in corrispondenza dei geni soppressori del tumore.
La figura mostra la distribuzione dei gruppi metilici lungo un filamento di DNA:
- Isole CpG / Canyon: zone centrali non metilate (sfere blu con la C).
- Bordi: presenza di hmC (sfere rosse), indicando un’attività di demetilazione in corso.
- Regioni esterne: presenza di mC (sfere viola), che rappresentano il DNA metilato e silenziato.
Ipossia cellulare come driver nella tumorigenesi
L’ipossia cellulare altera la metilazione del DNA attraverso perdita di ossidazione dell’epigenoma. La conversione di 5-metilcitosina in 5-idrossimetilcitosina da parte degli enzimi TET richiede ossigeno, mentre l’ipossia è comune nel cancro,suggerendo un potenziale effetto sinergico. Inoltre, l’ipossia induce l’attività dei fattori di trascrizione HIF (Hypoxia-Inducible Factor), che alterano l’espressione genica nelle cellule per far fronte all’ipossia e che possono favorire lo shift metabolico dell’energetica cellulare dalla fosforilazione ossidativa alla glicolisi anaerobia, evento che può determinare l’effetto Warburg sfruttato proprio dalle cellule tumorali per sopravvivere in condizioni ipossiche.
Come sopra descritto, l’ipermetilazione dei promotori del gene soppressore del tumore (TSG. dall’inglese tumor suppressor gene) conferisce benefici di crescita alle cellule tumorali, ma il modo in cui questi cambiamenti si presentano è stato finora scarsamente compreso.
Con lo studio CHAMALEO (così chiamato perché eseguito su cellule di camaleonte) viene dimostrato che l’ipossia tumorale riduce l’attività degli enzimi TET ossigeno-dipendenti, che catalizzano la demetilazione del DNA attraverso l’ossidazione della 5-metilcitosina.
La perdita di attività dei TET dipendeva unicamente dalla carenza di ossigeno e ha aumentato l’ipermetilazione dei promotori genici. Osservazioni simili sulla metilazione dei promotori genici sono state fatte su campioni di tumori di pazienti in cui i geni che contribuiscono a riparazione del DNA, regolazione del ciclo cellulare, angiogenesi e metastasi sono risultati molto spesso coinvolti. Ciò suggerisce, inoltre, una selezione clonale degli eventi di ipermetilazione che favorisce la crescita e le metastasi.
Nel complesso, i risultati dello studio CHAMELEO hanno confermato il ruolo regolatore dell’ipossia dei tumori sulla metilazione del DNA e, soprattutto, suggeriscono che le strategie destinate a normalizzare i livelli di ossigeno intratumorali invertano i cambiamenti epigenetici e potrebbero modulare le proprietà delle cellule tumorali. L’ipossia del tumore agisce, quindi, come un nuovo regolatore alla base della metilazione del DNA. Questo ci porta alla considerazione che risulta molto importante avere sempre un’adeguata ossigenazione delle cellule per impedire l’innesco di questi meccanismi patogenetici che possono determinare condizioni di instabilità genomica e attivazione di geni a carattere tumorale.
La supplementazione di vitamina C o ascorbato può potenziare l’attività delle TET e la demetilazione del DNA in cellule staminali embrionali, suggerendo un possibile ruolo regolatorio ambientale, mentre la supplementazione di vitamina A (retinolo) risulta capace di aumentare l’espressione delle TET.
Per quanto riguarda, invece, le sostanze naturali che, secondo recenti studi, possono controllare l’azione aberrante delle DNA metiltransferasi espressa nelle cellule tumorali possiamo citare le catechine del the verde e, in particolare, l’EGCG (epigallocatechingallato), il sulforafano dei broccoli, il resveratrolo, la quercetina e, infine, il selenio.
In sintesi, le TET sono enzimi chiave nella protezione dell’integrità epigenetica e genomica, contrastando la metilazione aberrante del DNA e contribuendo alla prevenzione della tumorigenesi e alla regolazione immunitaria.
Il nucleosoma
Il nucleosoma è l’unità strutturale e funzionale fondamentale della cromatina e consiste in un segmento di circa 147 coppie di basi di DNA avvolto per quasi due volte attorno a un ottamero di proteine istoniche (due molecole ciascuna di H2A, H2B, H3 e H4). I nucleosomi sono responsabili del primo livello di compattamento del materiale genetico nel nucleo cellulare e vengono spesso descritti come “perle su un filo“. Questa organizzazione consente al lungo filamento di DNA di essere contenuto all’interno dello spazio microscopico della cellula e regolazione dell’espressione genica. Oltre a compattare il DNA, i nucleosomi svolgono un ruolo chiave nella regolazione dell’espressione genica, in quanto le code degli istoni sporgono dal complesso proteico e possono subire modifiche chimiche, determinando se una specifica regione di DNA è accessibile o meno per la trascrizione, come descritto nel testo.
L’acetilazione degli istoni
L’acetilazione degli istoni è un’altra modifica epigenetica in cui gli enzimi HAT (dall’inglese Histone Acetyltransferases, in italiano istone acetiltransferasi) aggiungono gruppi acetile alle code amminoacide degli istoni, riducendo la carica positiva delle proteine e allentando la presa sul DNA. Il risultato è l’apertura della cromatina, che permette l’accesso ai fattori di trascrizione e attiva l’espressione genica. Il processo coinvolge due classi principali di enzimi che agiscono in modo opposto:
- Istone Acetiltransferasi (HATs): aggiungono i gruppi acetile, promuovendo il rilassamento della cromatina e l’attivazione dei geni.
- Istone Deacetilasi (HDACs): rimuovono i gruppi acetile, compattando la cromatina e reprimendo la trascrizione genica.
Interessante è ricordare che le HDACs si dividono in diverse classi che includono le varie sirtuine, argomento cui è stato dedicato un articolo in un numero precedente della rivista (settembre 2026).
L’equilibrio tra attività di HATs e HDACs è modulare e sensibile ai segnali cellulari, all’ambiente e allo stato di differenziazione cellulare. Disturbi in questa “bilancia epigenetica” possono contribuire a condizioni patologiche, tra cui neoplasie, malattie neurodegenerative e disordini metabolici.
I trasposoni
I trasposoni sono sequenze del DNA in grado di muoversi all’interno di questo, causando mutazioni quali delezioni, inversioni e traslocazioni. I retro-trasposoni sono appunto trasposoni che vengono trascritti in RNA e successivamente in DNA, utilizzano l’acido ribonucleico per il trasporto similmente ai retrovirus. L’enzima coinvolto è, quindi, la trascrittasi inversa. In biologia molecolare, questo enzima è lo strumento fondamentale alla base della tecnica diagnostica RT-PCR (Polymerase Chain Reaction a Trascrizione Inversa), utilizzata per rilevare e amplificare sequenze di RNA, tecnologia ampiamente diffusa nei laboratori biomedici per i test molecolari.
Tratto dal numero di ottobre 2026 di Medicina integrata
Bibliografia
- Bestor TH. The DNA methyltransferases of mammals. Hum Mol Genet. 2000; 9:2395–402.
- Jurkowska RZ, Jeltsch A. Enzymology of Mammalian DNA Methyltransferases. Adv Exp Med Biol. 2016;945:87-122.
- DiTroia SP, Percharde M, Guerquin MJ, Wall E, Collignon E, et al. Maternal vitamin C regulates reprogramming of DNA methylation and germline development. Nature. 2019; 573:271–5.
- Ito S, D’Alessio AC, Taranova OV, Hong K, Sowers LC, Zhang Y. Role of TET proteins in 5mC to 5hmC conversion, ES-cell self-renewal and inner cell mass specification. Nature. 2010; 466:1129–33
- Kim MS, Lee J, Sidransky D. DNA methylation markers in colorectal cancer. Cancer Metastasis Rev. 2010; 29:181–206
- Wu X, Zhang Y. TET-mediated active DNA demethylation: mechanism, function and beyond. Nat Rev Genet. 2017;18(9):517-534.
- Ginder GD, Williams DC. Readers of DNA methylation, the MBD family as potential therapeutic targets. Pharmacol Ther. 2018; 184:98-111.
- Bergman Y, Cedar H. DNA methylation dynamics in health and disease. Nat Struct Mol Biol. 2013;20(3):274-81.
- Shi DQ, Ali I, Tang J, Yang WC. New Insights into 5hmC DNA Modification: Generation, Distribution and Function. Front Genet. 2017; 8:100.
- Clouaire T, Stancheva I. Methyl-CpG binding proteins: specialized transcriptional repressors or structural components of chromatin?. Cell Mol Life Sci. 2008;65(10):1509-22.